Evolution der Schmetterlinge: 150 Millionen Jahre
Schmetterlinge sind ein junger Zweig der Schmetterlinge und Falter mit uralten Wurzeln. Von jurassischen Motten bis zur explosiven Vielfalt mit Blütenpflanzen — ihre 150-Millionen-Jahre-Geschichte.
Tiefe Wurzeln: Lepidoptera vor den Schmetterlingen
Um die Evolution der Schmetterlinge zu verstehen, müssen wir bei den Motten beginnen — denn Schmetterlinge sind Motten.
Die Ordnung Lepidoptera — die Schuppenflügler — erscheint im Fossilbericht vor etwa 200 Millionen Jahren im frühen Jura. Diese ersten Lepidoptera waren kleine, primitive Motten, die vermutlich Pollen oder sporentragende Pflanzen fraßen, nicht den Nektar von Blüten (die es noch nicht gab). Sie besaßen bereits das diagnostische Merkmal der Ordnung: winzige, abgeflachte, überlappende Schuppen auf der Flügeloberfläche — heute sichtbar als der schillernde „Staub", der beim Berühren von Schmetterlingsflügeln abfällt.
Das Fossil Archaeolepis mane aus dem frühen Jura von Dorset (ca. 190 Ma) ist das älteste gesicherte Lepidoptera, identifiziert anhand seiner charakteristischen Flügelschuppenstruktur. Diese frühesten Motten werden mit Gymnosperm-Pollen in Verbindung gebracht — die Ordnung erscheint zu früh für jede Verbindung zu Blütenpflanzen.
Die Angiospermen-Revolution
Das transformativste Ereignis in der Schmetterlingsevolution war die Radiation der Angiospermen (Blütenpflanzen) ab etwa 130–125 Millionen Jahren im frühen Kreide. Innerhalb von 30–40 Millionen Jahren dominierten Blütenpflanzen weltweit die terrestrische Vegetation — der schnellste große ökologische Übergang in der Geschichte der Landpflanzen.
Blüten schufen eine neue Ressource: Nektar — konzentrierte Zuckerlösungen, die gezielt Tierbestäuber anlocken und belohnen. Ein langer, gerollter Rüssel zum Entnehmen von Blütennektar ist die zentrale anatomische Innovation fortgeschrittener Lepidoptera, einschließlich aller Schmetterlinge. Der Rüssel evolvierte konvergent in mehreren Insektenlinien (Fliegen, Bienen, Motten) als Antwort auf dieselbe Ressource — eines der klarsten Beispiele evolutionärer Konvergenz im Tierreich.
Molekulare Uhren datieren die Abspaltung der Schmetterlingslinie von ihren Motten-Schwestergruppen auf etwa 98–100 Millionen Jahre — zeitgleich mit der mittelkretazeischen Diversifikation der Angiospermen. Dieses Timing ist kein Zufall: Schmetterlinge, wie wir sie kennen, sind grundsätzlich Geschöpfe der Blütenpflanzenwelt.
Ursprünge des Schmetterlings-Clades
Schmetterlinge (formal: der Clade Rhopalocera plus die Hedylidae) bilden eine einzige evolutionäre Linie innerhalb der Überfamilie Papilionoidea. Ihre nächsten Mottenverwandten unterscheiden sich je nach Phylogenie: Geometroidea (Spanner) erscheinen manchmal als Schwestergruppe, aber Arbeiten von Kawahara, Espeland und Kollegen legen das nicht eindeutig fest.
Die basale Divergenz innerhalb der Schmetterlinge — die Spaltung, die die frühesten Verzweigungen erzeugte — wird in den meisten Analysen auf etwa 98 Ma datiert. Die Hesperiidae (Dickkopffalter) spalteten sich zuerst ab, gefolgt von den Papilionidae (Schwalbenschwänze und Vogelfalter), und dann den verbleibenden drei Hauptfamilien (Pieridae, Lycaenidae, Nymphalidae) in rascher Folge.
| Linie | Ungefähre Divergenz | Ca. Arten heute |
|---|---|---|
| Hedylidae | ~100 Ma | 36 |
| Hesperiidae | ~98 Ma | ~4.000 |
| Papilionidae | ~90 Ma | ~600 |
| Pieridae | ~85 Ma | ~1.100 |
| Lycaenidae | ~80 Ma | ~6.000 |
| Nymphalidae | ~80 Ma | ~6.000 |
Diese Daten stammen aus molekularen Uhren; der Fossilbericht früher Schmetterlinge ist spärlich — sowohl wegen der Zerbrechlichkeit von Insektenflügeln als auch wegen der Seltenheit geeigneter Fossil-Lagerstätten.
Der Fossilbericht
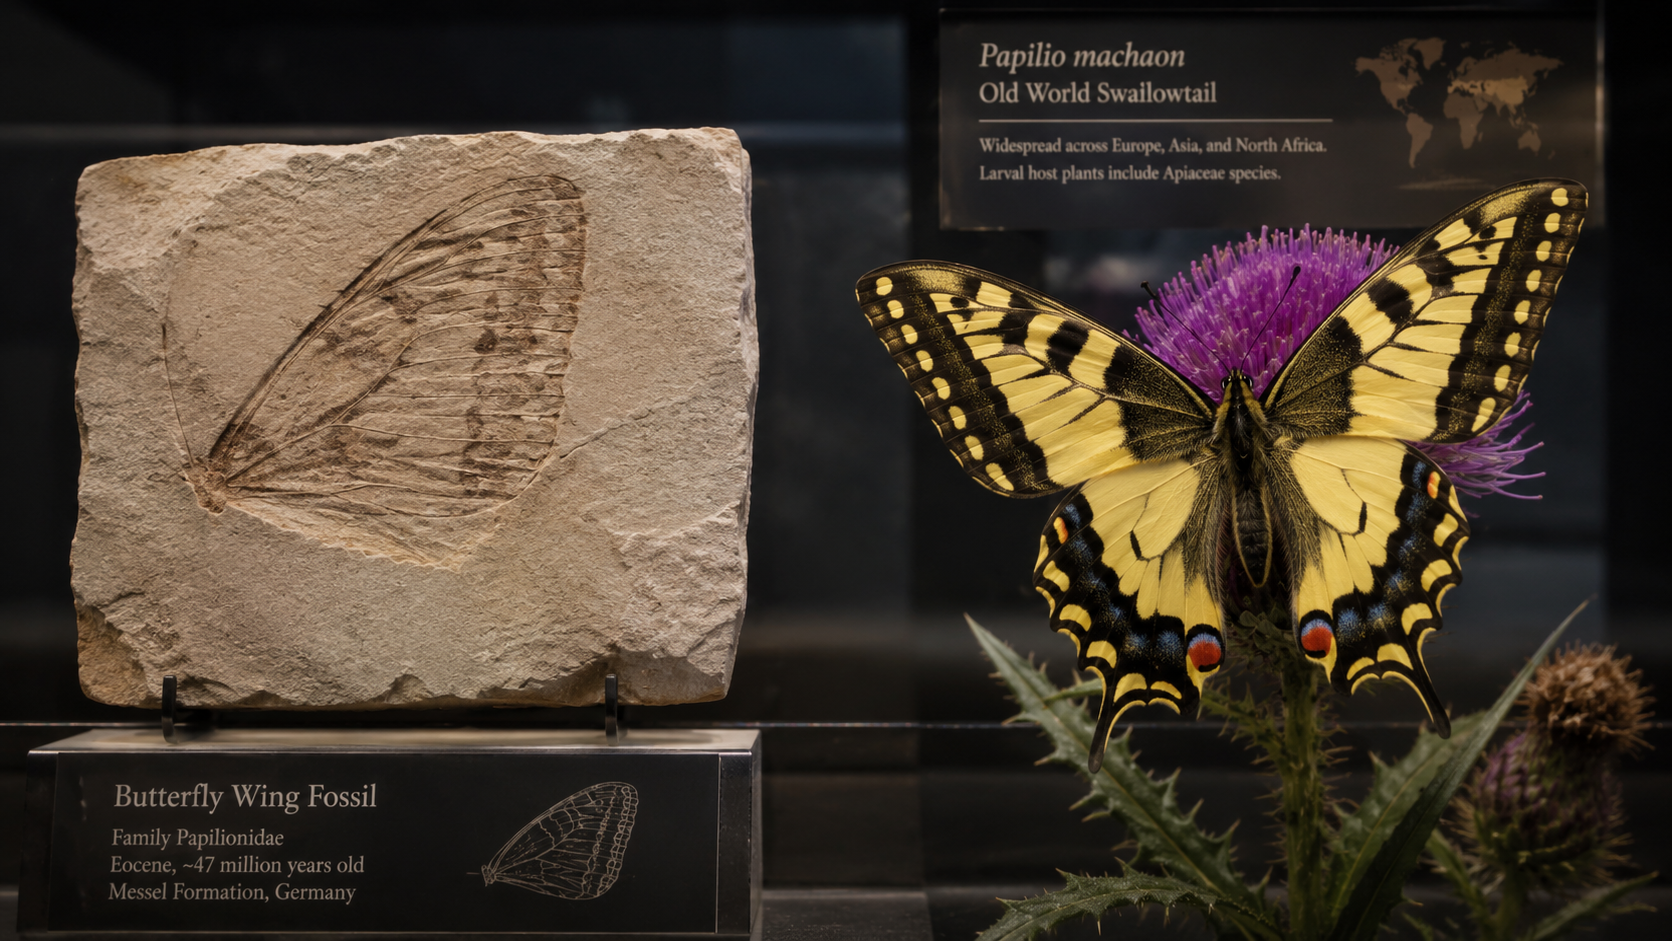
Die ältesten eindeutigen Schmetterlingsfossilien stammen aus dem Eozän (56–34 Ma):
- Prodryas persephone (Florissant-Formation, Colorado, ca. 34 Ma): exquisit erhalten mit sichtbarer Aderung, Schuppenabdrücken und sogar schwacher Farbmusterung. Der Flügelplan ist erkennbar nymphalid.
- Lethe corbieri (Baltischer Bernstein, ca. 40–44 Ma): ein Satyrinae-Nymphalide im Bernstein mit dreidimensionaler Oberflächendetailerhaltung.
- Verschiedene Lycaeniden-Fragmente aus eozänem Baltischen und Rovno-Bernstein zeigen, dass Bläulinge und Zipfelfalter bereits um 40–45 Ma divers waren.
Die Lücke zwischen dem molekularen Divergenzdatum (~100 Ma) und den ältesten Fossilien (~40–45 Ma) spiegelt Erhaltungsbias wider: der kretazeische terrestrische Fossilbericht ist weltweit lückenhaft, und weichkörperige oder zarte Insekten werden selten erhalten. Bernstein aus der mittleren Kreide (burmesischer Bernstein, ca. 99 Ma) enthält reichlich Lepidoptera, aber das sind kleine Motten; eindeutiges Material der Schmetterlingslinie aus dieser Zeit bleibt schwer fassbar.
Zentrale evolutionäre Innovationen
Vollständige Metamorphose (Holometaboly)
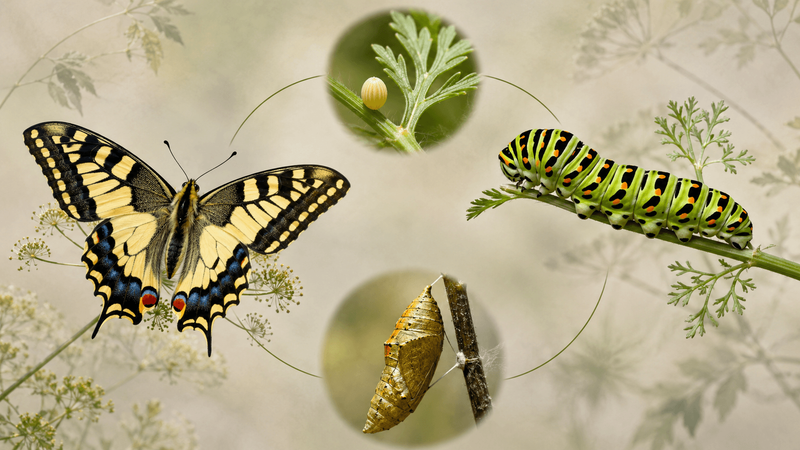
Alle Lepidoptera, einschließlich Schmetterlinge, durchlaufen vollständige Metamorphose: Ei → Larve (Raupe) → Puppe (Chrysalis) → Adult. Diese Entwicklungsstrategie, geteilt mit Käfern, Fliegen, Wespen und Bienen, erlaubt Larve und Adult, völlig verschiedene Ressourcen zu nutzen und unterschiedliche ökologische Nischen zu besetzen — die Raupe als blattfressende Wachstumsmaschine, der Adult als mobiler, fliegender Bestäuber und Partnerfinder.
Die Puppe — die scheinbar inaktive „Ruhephase" — ist in Wahrheit eine Periode radikaler Umorganisation, in der die meisten Larvengewebe abgebaut und zu Adultstrukturen umgebaut werden. Die Schmetterlingspuppe ist die sichtbarste Manifestation dieses Prozesses; ihre kantige, skulptierte Form und manchmal metallische Oberfläche gehören zu den schönsten Objekten der Evolution.
Farbsehen und Flügelfarbe
Schmetterlinge besitzen unter Insekten eines der ausgefeiltesten visuellen Systeme. Die meisten Arten sind tetrachromatisch — sie haben vier Farbrezeptortypen (Menschen drei), einschließlich UV-empfindlicher Rezeptoren, wodurch sie Farbmuster wahrnehmen, die für das menschliche Auge unsichtbar sind. UV-reflektierende Flügelmuster, für uns unsichtbar, für andere Schmetterlinge lebhaft, dienen der Artenerkennung und Partnerwahl.
Flügelfärbung erfüllt mehrere Funktionen, deren evolutionäre Treiber intensiv untersucht wurden:
- Tarnung: rindenähnliche Unterseiten (Charaxinae, Kallima), blattähnliche Form (Indischer Blattfalter), Augenflecken-Schreckdisplay
- Aposematismus: Warnfärbung bei giftigen Arten (Heliconius, Danaus)
- Müllersche Mimikry: zwei oder mehr giftige Arten teilen dasselbe Warnmuster und verstärken so das Vermeidungslernen bei Räubern
- Batessche Mimikry: eine genießbare Art ähnelt einer giftigen
Mimikry — Evolution in Echtzeit
Heliconius-Schmetterlinge der Neotropen lieferten einige der ersten und klarsten Belege für natürliche Selektion über menschlich beobachtbare Zeiträume. Verschiedene Populationen derselben Art (Heliconius melpomene, H. erato) tragen in verschiedenen Teilen ihres Verbreitungsgebiets dramatisch unterschiedliche Farbmuster — wo immer sie zusammentreffen, teilen sie dasselbe Muster, getrieben durch Selektion gegen Fraß durch Vögel, die das lokale Warnsignal gelernt haben. Die Genetik dieser Mimikry wurde detailliert analysiert: Wenige Loci mit großem Effekt schalten ganze Farbmuster-Module um und ermöglichen schnelle Evolution neuer Mimikry-Formen.
Wirtspflanzenspezialisierung und Koevolution
Die Koevolution zwischen Schmetterlingen und ihren larvalen Wirtspflanzen ist ein zweites, unabhängiges koevolutionäres Wettrüsten. Pflanzen entwickeln chemische Abwehr (Alkaloide, Glucosinolate, Herzglykoside) gegen Fraßfeinde; Schmetterlingslinien entwickeln Toleranz oder Sequestrierung dieser Verbindungen und wandeln Pflanzengifte oft in eigene Abwehr um. Die Spezialisierung der Pieridae auf Brassicaceae (Kohlartige) mit Glucosinolaten ist ein Beispiel: Pieriden-Raupen entwickelten glucosinolat-spaltende Enzyme; Brassicaceae entwickelten darauf „Nitrile-Specifier-Proteine", die den Glucosinolat-Abbau von den für die meisten Insekten abstoßenden toxischen Verbindungen ablenken. Das Wettrüsten geht weiter.
Kontinentdrift und Biogeographie
Die Verbreitung von Schmetterlingslinien über Kontinente spiegelt die Geschichte der Plattentektonik ebenso wie Ökologie wider. Die früh abspaltenden Papilionidae haben eine globale Verbreitung, konsistent mit einem Ursprung auf einem Proto-Gondwana-Kontinent; ihre tiefen Linien (Parnassiinae, Baroniinae) sind relictual in Hochgebirgen der Nordhalbkugel. Die Nymphalidae zeigen eine komplexe Gondwana-Laurasia-Geschichte, mit großen Linien asymmetrisch zwischen Alter und Neuer Welt verteilt — eher durch Vikarianz (Kontinenttrennung) als durch Dispersion.
Die Vogelfalter (Troides, Ornithoptera), größte aller Schmetterlinge, sind auf die australasische Region beschränkt — ihre Verbreitung folgt der Kollision der australischen und asiatischen Platte, die den Inselbogen des heutigen indomalayischen Archipels schuf, genau der Region, in der Vogelfalter maximale Vielfalt erreichen.
Schmetterlingsevolution heute
Evolution endete nicht mit dem Pleistozän. Dokumentierte evolutionäre Veränderungen in Schmetterlingspopulationen sind heute über Jahrzehnte messbar:
- Flügelmelanisierung als Reaktion auf industrielle Verschmutzung (Aglais urticae wurde in Teilen Europas im 20. Jahrhundert dunkler)
- Phänologische Verschiebungen — frühere Schlupftermine durch wärmere Frühlinge, erblich und über 40+ Jahre in britischen Monitoring-Daten verfolgt
- Arealerweiterung und Wirtspflanzenwechsel — der C-Falter (Polygonia c-album) wechselte im 20. Jahrhundert in Teilen Europas von Hopfen zu Brennnesseln als Wirtspflanze und ermöglichte so nördliche Arealerweiterung
Die Geschichte der Schmetterlingsevolution — von primitiven jurassischen Motten zu den heute lebenden 20.000 Arten — ist eine Geschichte kontinuierlichen Wandels, getrieben von denselben Kräften, die das Leben immer geprägt haben: Selektion, Mutation, Drift und die sich ständig wandelnde Landschaft der Artinteraktionen.